Homo sapiens tog steget ut ur Afrika för runt sjuttio tusen år sedan, då grupper av afrikanska jägare–samlare tog sig in i Mellanöstern, och därifrån vidare till Asien och småningom Europa för femtio tusen år sedan.
Utanför Afrika dominerade Homo neanderthalensis, och det uppstod friktion i mötet mellan de två hominiderna. Mellan grupper av afrikanska jägare–samlare bland sapiens fanns inte sådan rivalitet, utan man gick skilda vägar om man möttes, för att det kostar mindre när resurserna är ymniga. Men neandertal var halvbofasta i grottor på en kargare eurasisk kontinent, och härav följde krigets logik i strid om resurserna.
Man kunde a priori tänka sig att sapiens och neandertal i egenskap av kusiner förbrödrade sig och levde som ett folk, men evidensen talar emot en sådan tes. Tanken att vi inte skulle ha uppfattat varandra som olika arter är rent strunt från politiskt korrekta forskare, och i verkligheten drev talrikare grupper av sapiens neandertal på flykt.
Det var ett veritabelt genocid som pågick under tusentals år, men under den tiden skedde också utbyten av mer intim karaktär. Det skedde dock inte frivilligt, och inte heller särskilt ofta, men resultatet är ändå att moderna människor utanför Afrika alltjämt har 2–3 % av neandertals arvsmassa, motsvarande en tredjedel av artens samlade genom.
Det är en proportion som är stadd i kontinuerligt sjunkande, och den var betydligt högre fordom. Det är så för att det mesta av koden är skräp, och dessutom kan vara skadlig. I Asien dominerade istället Homo denisova, en systerart till neandertal. Motsvarande process där har resulterat i att asiater har bevarat 2–7 % av denisovas arvsmassa.
Men emigrationen ut ur Afrika för sjuttio tusen år sedan var inte den första, utan hade föregåtts av ett flertal andra, som dock inte ledde till varaktig närvaro på den eurasiska kontinenten – grupperna var för fåtaliga. Under sapiens drygt 300 000 års existens har ett antal utbrytningsförsök gjorts under tider då klimatförändringar och andra omständigheter möjliggjorde eller påskyndade sådana äventyr.
Vid sådana strapatser har emigranterna slutligen drivits undan av neandertal och denisova, men även här under tillfälligt utbyte av DNA-segment medelst våldtäkt eller kvinnorov. Man vet detta för att neandertal på motsvarande sätt har 3 % av äldre genom från sapiens, daterat till 2–300 000 år.
Inflöde i denisova och neandertal från arkaisk Homo erectus (CC BY 4.0 Hubisz, Williams och Siepel)
Till yttermera visso har man i denisova funnit att 1 % av dess arvsmassa härstammar från en äldre art av Homo, vilket nästan med nödvändighet betyder Homo erectus. Via denisova som mellanvärd fortlever därför en del av dess DNA i moderna människor, motsvarande 0.15 % av denisovas genom. Hur häftigt är inte det?
Neandertal och denisovas förgreningar (CC BY-SA 3.0 John D. Croft)
Både denisova (-200/-15 ka) och neandertal (-250/-40 ka) – och kanske även sapiens (-315 ka) – stammar ur Homo heidelbergensis (-700/-300 ka), som i sin tur är en utveckling ur Homo antecessor (-1.2/-0.8 Ma), som är en utveckling ur europeisk Homo erectus (-2.0/-0.1 Ma). Erectus var den första medlemmen i släktet att sprida sig i Eurasien, och den drevs småningom på flykten av denisova och neandertal, under samma förutsättningar som när sapiens drev undan neandertal och denisova. Man kan tänka sig att denisova i själva verket är en hybrid mellan neandertal och erectus under en sådan process, men eftersom vi saknar DNA från erectus går det inte att veta.
Människans och andra arters utveckling beskrivs ofta med hjälp av träd, där raka linjer förbinder fixa arter med varandra. En rimligare beskrivning är med hjälp av en väv, som förgrenas framåt, bakåt och sidledes mellan olika utvecklingslinjer, och med mindre fixa medlemmar.
Exempelvis är Homo sapiens av i dag inte samma sort som för 300 000 år sedan, utan har metamorferats i ett antal olika skepnader och även klyvts i underarter (exvs. Homo sapiens idaltu) under processer som isolation, genetisk drift och korsning mellan olika varianter och med andra släktingar i Homo. På samma sätt har utvecklingen inte utgått från ett enskilt geografiskt centrum (som Östafrika), utan har skett samtidigt på ett flertal olika platser med senare konvergens och divergens.
Sapiens vandring ut ur Afrika har gett ytterligare genetiskt material från neandertal, denisova och alltså även erectus, en veritabel ormgrop med korsbefruktningar som under andra omständigheter hade kunnat klassificeras som en ny artbildning, men som här fortlever i samma art som ett antal underarter (med något undantag).
Släktet Homo är härvidlag inte något undantag, utan företeelsen är legio i naturen. I vårt fall vet vi att intimiteten inte har varit frivillig på grund av att den har skett så sällan (man kan faktiskt räkna på det med genetiska metoder), men bland många arter är sexuella transgressioner utanför artbarriären vanligt förekommande.
Det är ett stycke sexuellt våld som gynnade vår art, i så måtto att processen gav upphov till den europeiska tidiga moderna människan (EEMH, samt asiatiska motsvarigheter), den hybridform som utvecklade beteendemässig modernitet med ett antal egenskaper som symboliskt tänkande, konstnärlig verksamhet, begravningsriter och teknologisk revolution, en utveckling som aldrig upphör att fascinera.
On man får tro Livsmedelsverket ska man äta fem «knytnävsstora» portioner frukt och grönsaker om dagen, vilket lär ska motsvara ett halvt kilo. I finare detalj råder verket oss att äta tre frukter och två «rejäla nävar» grönsaker för att vi ska få i oss sådana ämnen «som kan vara svåra att få i sig i tillräckligt av».
«Nävar» är kanske ett bättre begrepp än det helt intetsägande «portioner», men rådet i övrigt är ändå missriktat. Det har inte någon gång under mänsklighetens utveckling varit naturligt att proppa i sig sådana mängder vegetabilier, utan är ett helt modernt påhitt.
Jag skulle vilja kalla det «flogistondiet», en påhittad form av näringslära med ytligt stöd i vetenskap. «Flogiston» antogs före syrets upptäckt vara en form av substans som förekom i brännbara ämnen, det vill säga en ad hoc-hypotes utan förankring i verkligheten.
På samma sätt förhåller det sig med i stort sett samtliga vetenskapliga resultat kring diet. Studierna bygger nästan uteslutande på självrapportering, som är en sällsynt dålig metod. Forskare är pressade att publicera, och finner därför upp alla upptänkliga hypoteser om vad som kan tänkas gynna hälsa och välbefinnande, i allt från «superbär» till «antioxidanter».
Korn av sanning finns förstås i sådana resultat, särskilt om de kan beläggas med mer hårdkokta djurförsök, men de stupar oftast på att det i princip inte går att isolera enskilda ämnens påverkan. Det finns helt enkelt inga ämnen som är särskilt nyttiga.
Mycket av kvacksalveriet finner dock sin väg till allmänheten, i form av populärvetenskapliga framställningar om allt från ketogenisk diet till högintensiv träning – det utlovade lyckoriket i form av en genväg till bättre hälsa, ett «superbär» eller kanske ett rött piller. Flogistondieter.
Om man ändå ska försöka utröna någon bärande struktur i det myller av skräpvetenskap som existerar, finns det några rön som är värda att ta fasta på. Det första gäller periodisk fasta, tidsbegränsat ätande eller vad man nu vill kalla det. Exakt hur man går tillväga i en sådan kalorirestriktion – 5:2, 16:8, traditionell fasta – är mindre viktigt.
Den miljö i vilken människan har utvecklats är inte kylskåpets med ständig tillgång på mat, utan en mer frugal tillvaro i vilken man tillbringar längre stunder utan någon föda alls eller på sin höjd några nötter. Jägare–samlare kan samtidigt frossa i mat när tillfälle bjuds, till exempel efter en dags jakt.
Periodisk fasta emulerar den tillvaron. Fastan ger matsmältningsapparaten andrum, samtidigt som det cellulära maskineret får tillfälle att reparera och bygga om. Så länge det finns glukos i blodet prioriteras inte sådan reparation, utan att nyttja och lagra energi i form av fett. Glukos i blodet finns så länge man tillför kolhydrater via födan, och försvinner inte förrän efter halvt dygn, då kroppen istället förbränner fett och producerar ketonkroppar – härav ketodiet.
Huruvida periodisk fasta är föryngrande återstår att bevisa, men metoden ger i vart fall normalisering av vikten om man har för många kilon att bära på. Det spelar inte så stor roll vad man äter utanför fastan, eftersom fettförbränningen under fastan reglerar fetthalter i blodet och i cellerna. Att gå hungrig en längre stund varje dag är därför nyttigt, och ligger inom den normala viljestyrkans kapacitet.
Den så kallade Okinawadieten är en sådan form av kalorirestriktion som tidigare gav öborna världens längsta medellivslängd och liten förekomst av moderna välfärdssjukdomar. Det visade sig att de inte åt någon frukt alls och bara mindre mängder ris och spannmål, men däremot väldigt mycket sötpotatis.
Livsmedelsverkets lista över «rekommenderat dagligt intag» är ett skämt i sammanhanget, och okinawaborna skulle i modern mening anses vara undernärda. Men de levde alltså längre och var även mycket friskare än typiska västerlänningar. Nyckeln i detta är inte sötpotatisen eller vad de åt, utan kalorirestriktionen – att ge kroppen tillfälle att regenerera celler och att hålla nere vikten är här det essentiella.
Födan som intas utanför fastan måste naturligtvis innehålla de grundläggande näringsämnen som kroppen kräver, men de är inte tillnärmelsevis så omfattande i mängd som Livsmedelsverkets RDI-tabeller anger. I själva verket går det överhuvudtaget inte att från den kravlistan bygga en diet som å ena sidan ger samtliga behov och å den andra begränsar antalet kalorier till en rimlig nivå. Eller för den delen är ätbar.
Det andra rönet gäller således mer vad man ska utesluta i sin diet än vad man faktiskt ska äta. Raffinerat socker är under alla omständigheter ingen bra föda, eftersom det sätter fart på insulinproduktion och lagrar överskottet i form av fett. Vid sockerrik föda får kroppen aldrig tillfälle till cellreparation utan är konstant upptagen med att reglera glukosnivån – det är ett dunderrecept för diabetes, fetma, cancer och andra sjukdomar.
På samma sätt är mjölk ingen bra föda för vuxna, även om man är laktospersistent. Det är utmärkt för växande barn, medan vuxna gör bättre i att inmundiga kultur och ost. Alkohol är trevligt, men på det stora hela inte nyttigt – här har vetenskapen torrt på fötterna, och så även i fråga om för stort intag av salt.
Vad man faktiskt ska äta är å andra sidan en fråga om individuellt arv. Sojapojkar med arv från anatoliska jordbrukare (EEF) och liknande släkten är måhända mer tåliga mot spannmål och vegetabiliska produkter, och kan kanske livnära sig på en spartansk vegansk diet.
För egen del rasar magen fullständigt när jag försöker mig på ett sådant äventyr, och min kropp kräver helt enkelt en mer animalisk bas med ägg, ost, fisk och kött som grund och en mindre andel vegetabilier och spannmål. För oss med istidsarv i västliga jägare–samlare (WHG) och äldre nordeuraser (ANE) är detta den naturliga dieten, medan frukt egentligen är främmande om än acceptabelt.
För den kategorin nordeuropéer utgör fett och protein huvuddelen av energiintaget, och ger tillsammans med kalorirestriktion den optimala balansen i dieten. Fett ger ren energi som inte omvandlas till glukos och inlagrat fett utan förbränns, om inte annat under fasteperioden, medan protein ger de aminosyror kroppen behöver för ämnesomsättningen. Mineralämnen, vitaminer och andra mikronutrienter får man samtidigt i fullt tillräcklig dosering med en sådan bas.
En enkel och rik diet med hunger som inbyggt koncept.
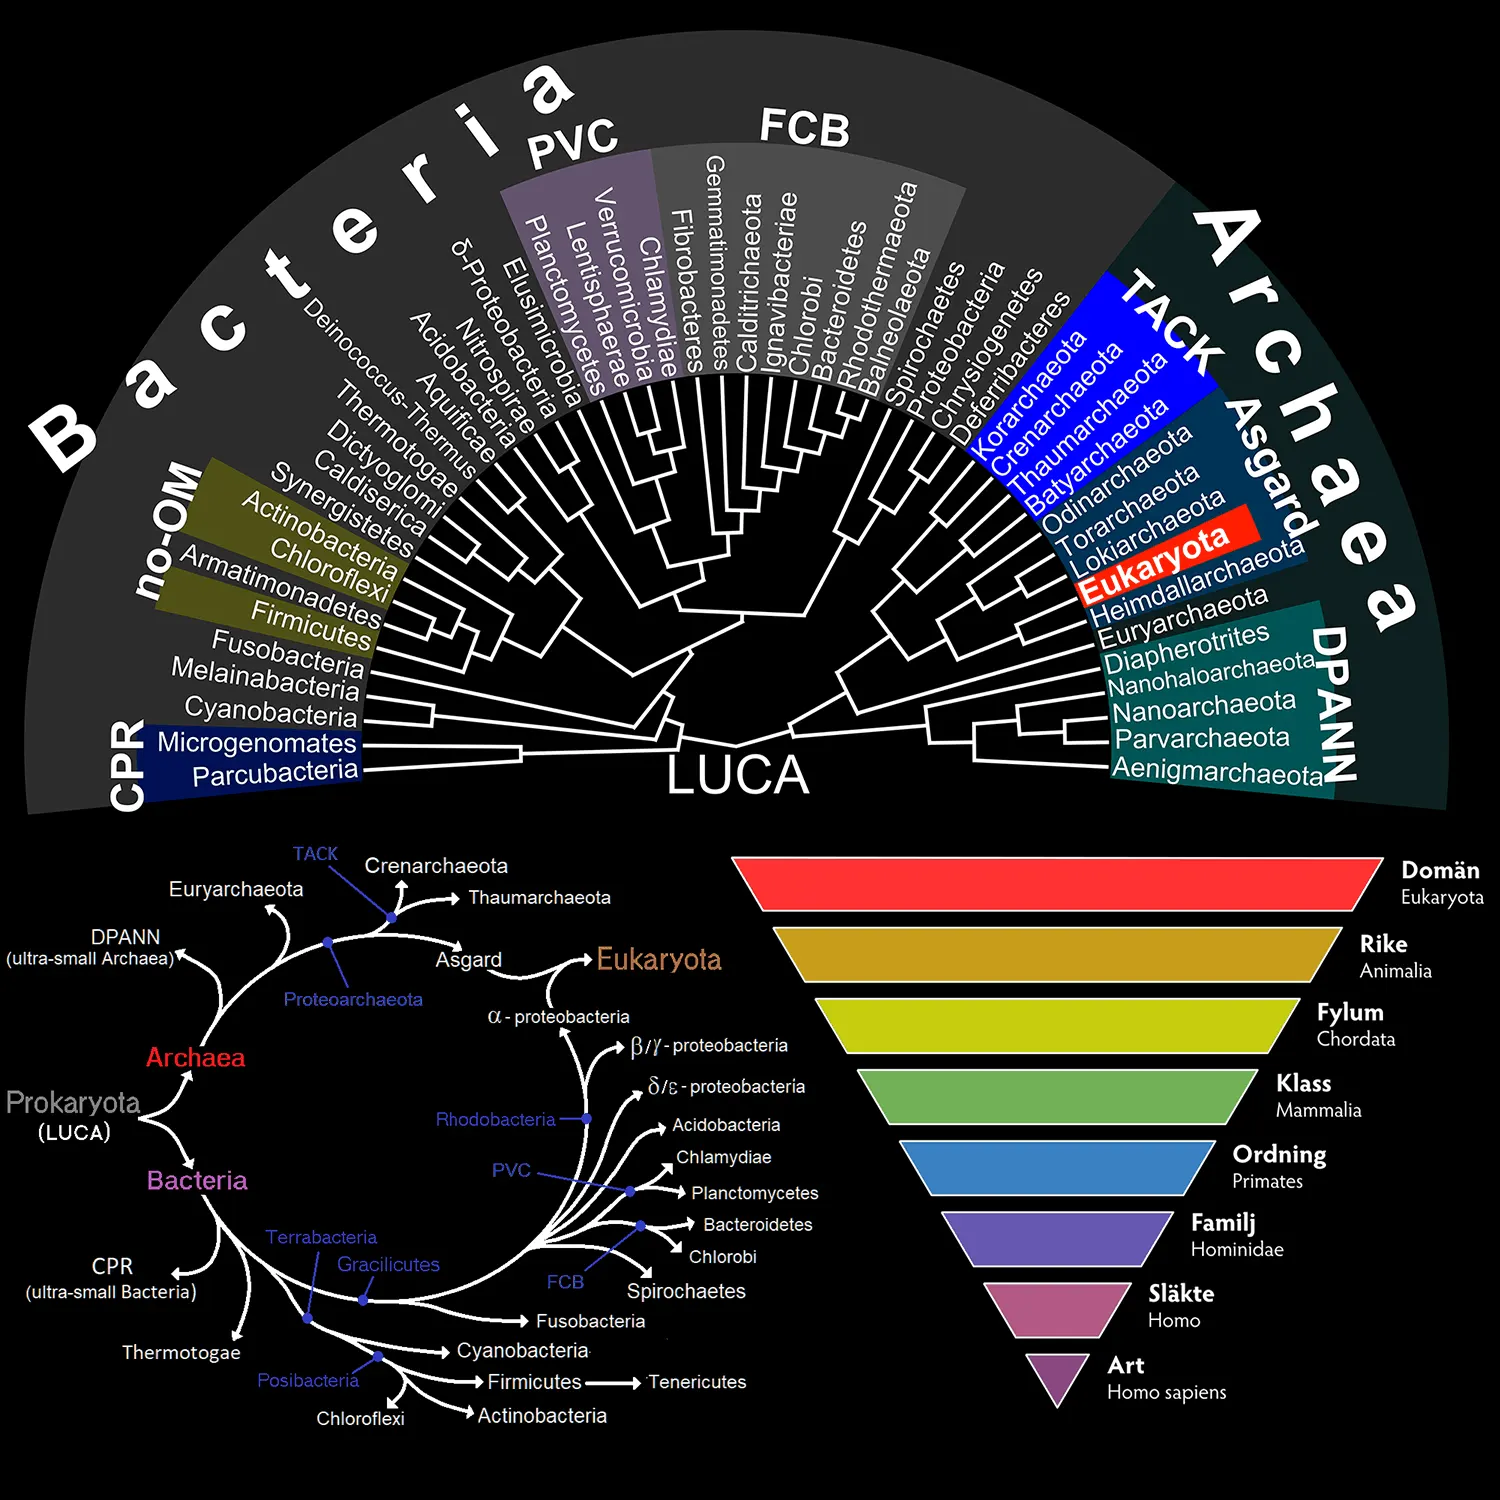
Såvitt man kan förstå är människans stamtavla mest utförligt beskriven i klassificeringen Natura Biota (Archaea Proteoarchaeota Eukaryomorpha) + (Bacteria Proteobacteria α-Proteobacteria) → Eukaryota Orthokaryota Neokaryota Scotokaryota Podiata Unikonta Obazoa Opisthokonta Holozoa Filozoa Choanozoa Animalia Eumetazoa Parahoxozoa Bilateria Nephrozoa Deuterostomia Chordata Olfactores Craniata Vertebrata Gnathostomata Eugnathostomata Euteleostomi Sarcopterygii Rhipidistia Tetrapodomorpha Eotetrapodiformes Elpistostegalia Stegocephalia Tetrapoda Reptiliomorpha Amniota Synapsida Eupelycosauria Metopophora Haptodontiformes Sphenacomorpha Sphenacodontia Pantherapsida Sphenacodontoidea Therapsida Eutherapsida Neotherapsida Theriodontia Eutheriodontia Cynodontia Epicynodontia Eucynodontia Probainognathia Chiniquodontoidea Prozostrodontia Mammaliamorpha Mammaliaformes Mammalia Theriiformes Holotheria Trechnotheria Cladotheria Zatheria Tribosphenida Theria Eutheria Placentalia Boreoeutheria Euarchontoglires Euarchonta Primatomorpha Primates Haplorhini Simiiformes Catarrhini Hominoidea Hominidae Homininae Hominini Hominina Homo sapiens sapiens, i enlighet med den systematik som fanns upp av Carl von Linné.
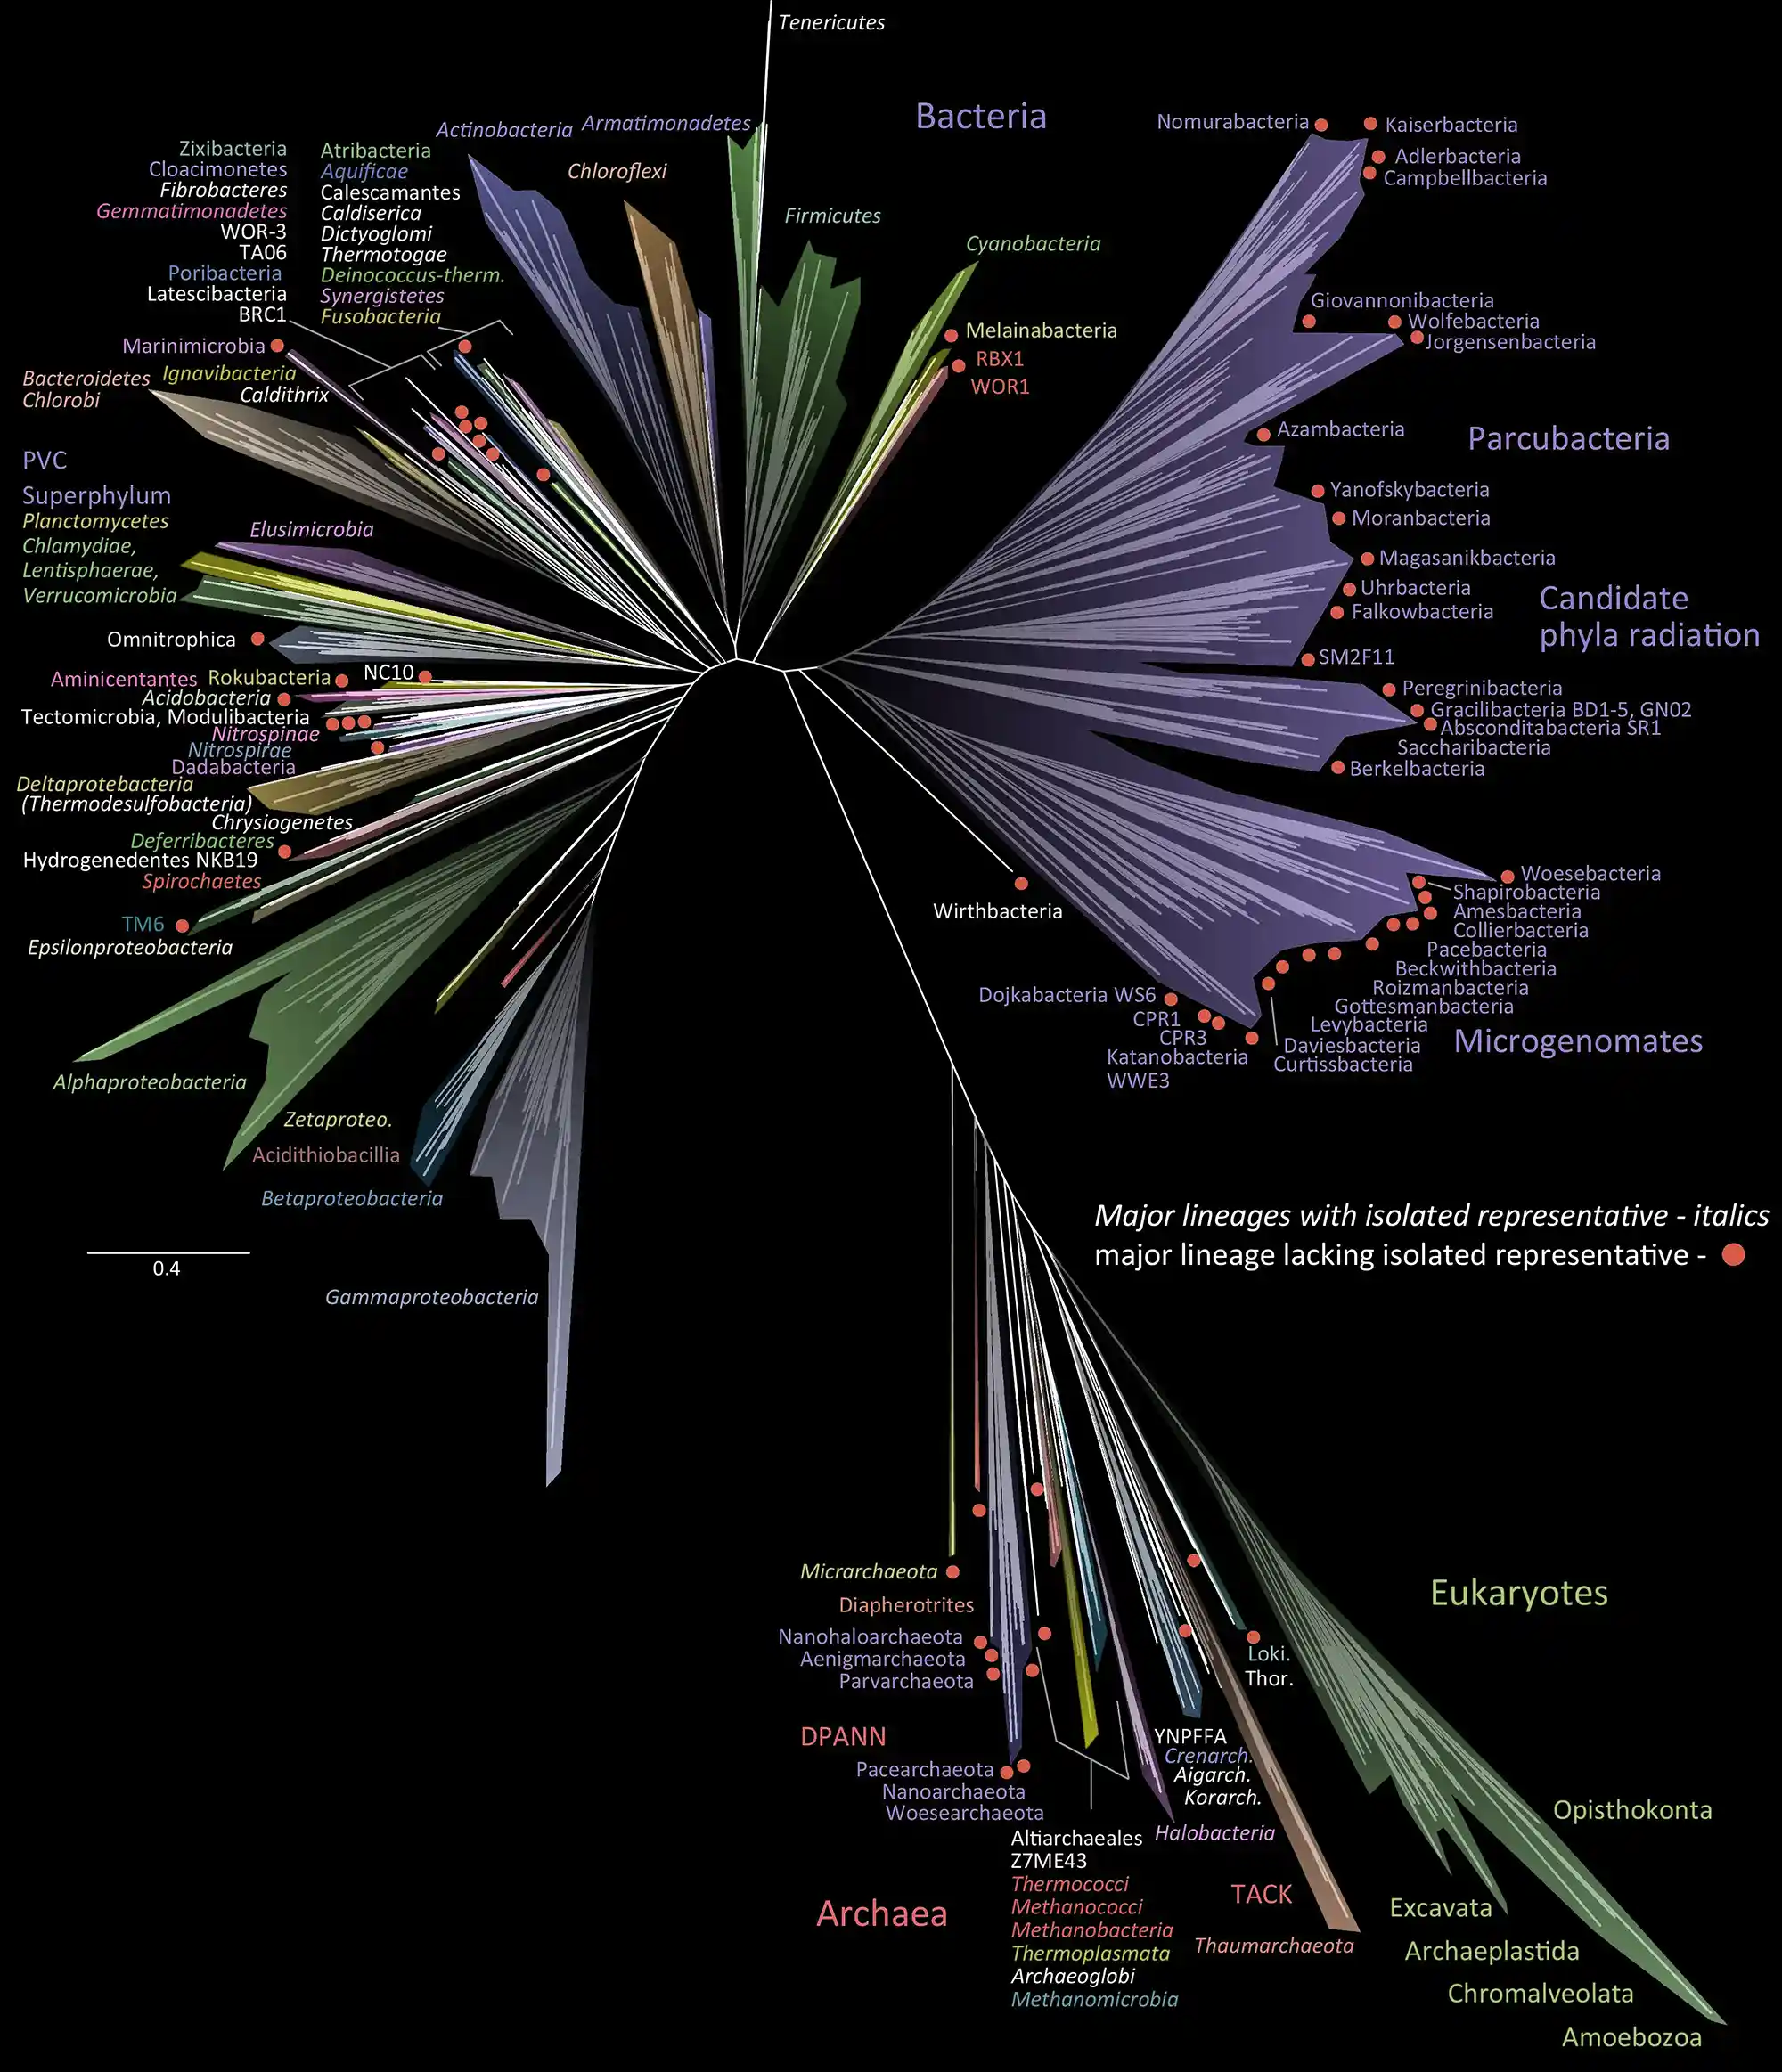
Natura Biota indikerar här naturens biom, det vill säga allt liv som existerar på jorden. Det yttersta ursprunget är inte klarlagt, men hypotetiseras bestå av den senaste universella gemensamma förfadern (LUCA), som alla i dag levande organismer stammar från. LUCA utgör däremot inte det första livet, på samma sätt som Y-kromosoms-Adam och mtDNA-Eva inte utgjorde de första människorna.
Archaea (-3500 Ma) är en domän som har utvecklats ur LUCA, och den omfattar organismer som redan är välutvecklade biologiska fabriker, sprungna ur tidig biologisk evolution och än tidigare kemisk evolution under abiogenesen, den emergenta process i vilken autokatalytiska system med självreplikering av RNA-strängar inkapslade i en protocell med ett skyddande lipidhölje uppstod. Det är ytterst en fråga om effektiv elektrontransport för att finna minimal energinivå för något molekylärt tillstånd.
Arkéer skiljer sig från bakterier (Bacteria) genom eterbindning i membranlipider samt mer komplex transkription av RNA till mRNA och slutligen proteiner. Arkéer och bakterier hör till prokaryoter, organismer med cellkärna utan cellmembran, mitokondrier eller andra organeller.
Människan är dock varken en arké eller en bakterie, utan en eukaryot (Eukaryota), en tredje domän som kännetecknas av mer komplexa celler samt en cellkärna med cellmembran. De tre domänerna kan formellt skiljas ut genom hur ribosomalt rRNA verkar i cellerna.
Eukaryota (-1850 Ma) antas ha uppstått genom symbiogenes av bakterier och arkéer, nämligen sammanslagning av Bacteria Proteobacteria Alphaproteobacteria och Archaea Proteoarchaeota Eukaryomorpha(Asgard). Fria prokaryoter har således fångats i en gemensam cell och där förslavats i vidare utveckling mot mer komplexitet, varvid α-Proteobacteria har blivit en mitokondrie. Vidare endosymbios med cyanobakterier har på samma sätt gett upphov till kloroplaster, organeller förmögna till fotosyntes i alger och växter.
Endosymbios av arkéer och bakterier gav upphov till eukaryoter och komplext liv.
Eukaryoter kännetecknas av förmåga till asexuell reproduktion i mitos och sexuell i meios, samt av flercellighet med epigenetiskt bestämda celltyper i olika slags vävnader. Djur, växter och svampar är de vanligaste rikena i domänen, med en rest i protister för organismer som är svårare att klassificera.
I det vidare fylogenetiska utvecklingsträdet finner man ett antal klader eller grenar som representerar distinkta funktioner, till exempel Orthokaryota, som bland annat definieras av ortogonala centrioler och en staplad golgiapparat, samt Neokaryota, som avskiljer basala encelliga heterotrofa eukaryoter i Excavata från den gren som leder till djur, växter och svampar.
Neokaryoter förgrenas i sin tur i å ena sidan Bikonta (organismer med celler med två flageller), som leder vidare till Archaeplastida med alger och landväxter, och å den andra Scotokaryota, som leder till djur och svampar. Vidare förgrening av Scotokaryota ges av Podiata, som skiljer ut andra organismer utanför linjen till djur och svampar.
Unikonta (organismer med celler med en flagell, -1400 Ma) följer ur Podiata, och har en gren i Amoebozoa, en återvändsgränd som definierar amöbor och protister, men också en som leder vidare till mer avancerade organismer i Obazoa. Unikonter skiljer sig i övrigt från bikonter genom förekomsten av en tredubbel genfusion.
Obazoa (-1301 Ma) förgrenar sig dels i Breviata och Apusomonadida, två klasser av zooflagellater utan vidare förgrening, och dels i den viktiga kladen Opisthokonta (-1300 Ma). Opistokonter kännetecknas av att cellerna har en enskild flagell i bakre ändan, medan andra eukaryoter kan ha flageller i främre ändan. Har celler hos människor verkligen en sådan flagell? Ja, i form av spermier, innan den fortsatta kroppsplanen manifesteras enligt senare evolutionär utveckling.
Opistokonterna har två utvecklingslinjer, där Holomycota leder till svampriket, och Holozoa (-1100 Ma) till djur och en del encelliga organismer som choanoflagellater. Även Filozoa (-1000 Ma) och Choanozoa (-950 Ma) skiljer ut djur från en del andra organismer i den vidare utvecklingen, till exempel choanoflagellater.
Opistokonter och andra eukaryoter är en mindre del av livet på jorden.
Animalia (-665 Ma) eller riket av djur följer ur Choanozoa. Typiskt för organismer i riket är förmåga till rörlighet, heterotroft näringsupptag, aerobisk respiration och sexuell fortplantning. Sådana organismer möjliggjordes genom tillväxt av syre i atmosfären under Kryogenium -720/-635 Ma som ett resultat av cyanobakteriers respiration.
Ett underrike till Animalia utgörs av Eumetazoa (-635 Ma) som omfattar alla flercelliga djur med äkta cellvävnad, till skillnad från svampdjur i systergrenen Porifera. I Eumetazoa är Parahoxozoa (-605 Ma) vidare en monofyletisk klad som definierar organismer med så kallade hox-gener för uttryck av kroppsplanen. Kladen står i kontrast till Ctenophora eller kammaneter, ryggradslösa djur som saknar sådana genuttryck.
I den vidare taxonomin följer tvåsidiga djur i Bilateria (-560 Ma), organismer som har två i stort sett symmetriska kroppshalvor. De flesta djur har sådan symmetri, förutom organismer i systerkladen Cnidaria och Placozoa, kammaneter och svampdjur. Symmetrin behöver inte vara fullständig, varför enstaka organ som hjärta kan förekomma ensidigt.
Den tvåsidiga strukturen innebär i regel att bilaterala organismer har öppningar i främre respektive bakre ändan för tillförsel av näring och utsöndring av exkrementer. Öppningarna bildas under gastrulation i embryonalt stadium, då en skålformad mage bildar centrum av ett matsmältningssystem. Öppningarna bildas inte samtidigt, utan sker konsekutivt. Existensen av en väldefinierad främre ända främjar samtidigt framväxten av ett huvud med sensoriska organ och ett nervsystem, och småningom även en hjärna.
Deuterostomia (-540 Ma) betecknar ett överfylum av sådana organismer i vilka den ursprungliga öppningen fungerar som anus, medan Protostomia (-540 Ma) utgör ett systerfylum med organismer i vilka den ursprungliga öppningen fungerar som mun. De båda samlas i Nephrozoa (-558 Ma), som avskiljer fylumet Xenacoelomorpha av organismer utan verkligt matsmältningssystem.
Till protostomerna hör de flesta ryggradslösa djur likväl som leddjur i form av insekter och kräftdjur. Deuterostomerna utvecklas å ena sidan i sjögurkor, sjöstjärnor och andra ryggradslösa tagghudingar i Ambulacraria, och å den andra i ryggsträngsdjur i fylumet Chordata (-535 Ma) med bland annat en ryggsträng och en svansstruktur i förlängning av anus. Ryggsträngsdjuren framträder under den kambriska explosionen, med snabb evolution i avancerat liv.
Ryggsträngsdjuren har en förgrening i kladen Olfactores (-535 Ma) respektive Cephalochordata, där den senare främst utgörs av enkla lansettfiskar. Olfactores indelas vidare i underfylumet Tunicata av manteldjur omfattande sjöpungar och andra akvatiska organismer, samt i kraniedjur i Craniata (-535 Ma).
Kraniedjuren är nära nog synonyma med ryggradsdjuren i underfylum Vertebrata (-520 Ma), som kännetecknas av organismer med ett skyddande hölje runt ryggsträngen. Höljet bildar ett endoskelett, som ger organismen struktur och bättre rörelseförmåga. Pirål är dock ett exempel på ett kraniedjur som inte är en vertebrat, varför en distinktion kan motiveras.
Gnathostomata (-462 Ma) eller käkmunnar utgör ett infrafylum av den förkrossande majoriteten av ryggradsdjur, med pansarhaj som en tidig företrädare och nutida ben- och broskfiskar som moderna. Utvecklingen av däggdjur och människor har således gått via fiskar med gälar och fenor. En underavdelning är Eugnathostomata av verkliga käkmunnar, till skillnad från primitiva pansarhajar.
Verkliga käkmunnar har en vidare indelning i Euteleostomi eller Osteichthyes (-430 Ma), det vill säga benfiskar, som alltjämt är den största klassen av ryggradsdjur. En parallell klass (relativt fiskar) utgörs av bronsfiskar i Chondrichthyes, till vilken hajar och rockor hör, samt den utdöda klassen Acanthodii av hajliknande fiskar med romboida fjäll.
I Euteleostomi återfinns de strålfeniga fiskarna i Actinopterygii, som omfattar nästan alla nu levande fiskar. Den parallella underklassen av lobfeniga fiskar i Sarcopterygii (-423 Ma) har i nutid lungfiskar som representanter. Ur de lobfeniga fiskarna stammar dels numera utdöda kvastfeniga fiskar i Rhipidistia (-416 Ma) och vidare i Tetrapodomorpha (-409 Ma), fiskar som ur fenor utvecklade fotliknande extremiteter för att mer effektivt kunna fånga byten i strand- och bottennära miljöer.
En vidare indelning av Tetrapodomorpha har vi i Eotetrapodiformes (-400 ma), Elpistostegalia (-385 Ma) och Stegocephalia (-375 Ma), i allt finare utveckling mot amfibieliknande egenskaper i landryggradsdjuren Tetrapoda (-370 Ma). Fyrfotingarna utvecklade dock sina extremiteter i vattenmiljö innan de nyttjades på land.
Tetrapoderna utvecklades i å ena sidan Batrachomorpha och Amphibia, som inte leder till människan, och å andra sidan Reptiliomorpha (-340 Ma) av reptilliknande groddjur i en process som ledde till intern fertilisering i ägg som lades på land snarare än i vatten, där den senare egenskapen är kännetecknande för Amniota (-330 Ma).
Amniota omfattar kräldjur (inklusive fåglar) i Reptilia och synapsider i Synapsida (-312 Ma), men alltså inte groddjur i Amphibia. Synapsider eller stamdäggdjur är den linje som leder till oss, och vi är därför inte släkt med kräldjuren utan utgör en parallell utveckling. Kännetecknande för synapsider är tinningsöppningar i kraniet, som ger dels bättre fäste för käkmuskler och dels mindre vikt. En differentierad tandrad med specialiserade tandfunktioner kan också skönjas.
Synapsiderna karakteriseras vidare av förmåga till upprätt kroppshållning, endoterm reglering av kroppstemperaturen (varmblodighet), en protopäls, samt mjölkkörtlar för att fukta ägg utan kalciumskal, särskilt i senare utvecklingar som Eupelycosauria, Metopophora, Haptodontiformes, Sphenacomorpha, Sphenacodontia, Pantherapsida och Sphenacodontoidea (-300 Ma), som främst definieras genom varierande proportioner i kraniets ben och tänder.
Ordningen Therapsida (-275 Ma) utgör ättlingar till synapsiderna, och kännetecknas bland annat av lemmar under kroppen snarare än utstrålande från sidan som hos reptiler. Hår, inklusive morrhår, förekommer i senare utvecklingar, likväl som mjölktänder, tre ben i mellanörat, sju halskotor och en särskild bröstkorg. Likt synapsiderna har therapsiderna en gradvis raffinering, som klassificeras i kladen Eutherapsida (-275 Ma), Neotherapsida (-270 Ma), Theriodontia (-270 Ma) och Eutheriodontia (-265 Ma), med mer däggdjursliknande tänder.
Cynodontia (-260 Ma) – «hundtänder» – hör till en underordning av therapsider som överlevde perm–triasutdöendet vid -252 Ma, och därefter var hänvisad till att leva i skuggan av de dinosaurier som dominerade. Therapsiderna hade tidigare själv dominerat landlivet, men fick hädanefter nöja sig med ett råttliknande nattaktivt liv i mörker och under jord. Levernet gav sämre syn, men främjade bättre hörsel samt sensoriska morrhår. Cynodonterna var också först med att kunna tugga och andas samtidigt, en egenskap du förmodligen aldrig har reflekterat över.
Den vidare vägen mot däggdjur går via Epicynodontia (-260 Ma), infraordningen Eucynodontia (-250 Ma), parvordningen Probainognathia (-240 Ma) samt kladen Chiniquodontoidea (-230 Ma) och Prozostrodontia (-230 Ma), med mindre gradvisa förändringar i anatomi och funktion.
Mammaliamorpha och det snävare Mammaliaformes (-225 Ma) av däggdjursliknande organismer följer ur cynodonternas utveckling. Mjölktänder och ej ersättningsbara permanenta tänder med emalj underlättar nedbrytningen av föda för större kaloribehov vid endoterm reglering. Digivning till ungar är en typisk egenskap. Däggdjuren i klassen Mammalia (-225 Ma) kännetecknas även av ett mellangärde, ett hjärta med två kammare och förmak samt termoreglering kontrollerad av hjärnan.
Processen att förlägga fertiliseringen internt istället för i ägg fullbordas i Theriiformes (-220 Ma), som avskiljer monotremer som kloakdjur. Holotheria (-220 Ma) och Trechnotheria (-216 Ma) är två raffineringar. Cladotheria, Zatheria och Tribosphenida (-165 Ma) utvecklar moderna skulderblad och förfiningar av bakbenen samt ytterligare förändringar i tandraden.
Födsel av levande ungar uppträder därefter i Theria och Eutheria («riktiga bestar») (-161 Ma), med en näbbmusliknande och trädlevande Juramaia sinensis som första kända representant.
Högre däggdjur i infraklassen Placentalia, det vill säga moderkaksdjur, uppträder i fossilen från -66 Ma, då dinosauriernas herravälde är till ända, men de uppstod troligen tidigare. De radieras emellertid snabbt då nya nicher blir tillgängliga, och däggdjuren blir snabbt dominerande. Utan det konstanta hotet från dinosaurier ökar däggdjuren även snabbt i storlek och blir dagaktiva.
Magnordningen Boreoeutheria (-65 Ma) innehåller dels kladen Laurasiatheria av placentadäggdjur på den laurasiska kontinenten, numera omfattande rovdjur, fladdermöss, näbbmöss, valar och hovdjur, och dels överordningen Euarchontoglires (-65 Ma) av gnagare, hardjur, spetsekorrar, pälsfladdrare och – primater. De tre sista djurgrupperna samlas i den snävare storordningen Euarchonta (-65 Ma) av «sanna förfäder».
Mirordningen Primatomorpha (-65 Ma) reducerar gruppen ytterligare till att omfatta dels pälsfladdrare i ordningen Dermoptera, dels primater i ordningen Primates (-55 Ma). Primaterna indelas i sin tur i underordningen Strepsirrhini eller lägre primater, samt i Haplorhini (-50 Ma) eller högre primater. De högre primaterna är dagaktiva och förlitar sig mer på syn än lukt. De lägre primaterna kännetecknas istället av våta näsor och därför bättre luktsinne.
Haplorhini har en indelning i infraordningen Tarsiiformes och dess systerordning Simiiformes (-40 Ma). Den senare förgrenas i dels brednäsor i parvordningen Platyrrhini (-31 Ma), som uteslutande har sina habitat i den Nya världen, dels smalnäsor i Catarrhini (-35 Ma) i den gamla. Vi människor är smalnäsor med parallella näsborrar och en motsättlig tumme för bättre gripförmåga, medan brednäsorna aldrig lämnade träden.
Smalnäsorna har en vidare indelning i markattartade apor i Cercopithecidae samt i överfamiljen Hominoidea (-21 Ma) av människoartade apor. Hominoidea kännetecknas av större rörelseförmåga till följd av flitigt svingande i träd. En vidare förgrening görs i gibboner i Hylobatidae samt i familjen Hominidae (-17 Ma) omfattande gorillor, schimpanser, orangutanger, bonobo och människor.
Underfamiljen Homininae (-13 Ma) skiljer ut gorillor i tribus Gorillini och övriga i Hominini (-6 Ma), medan orangutangerna finns i systergruppen Ponginae. Hominini består i sin tur av subtribus Panina omfattande schimpanser i släktet Pan samt av subtribus Hominina (-4 Ma) respektive Australopithecina (-5.6 Ma).
Människans utvecklingslinje korsas av såväl Hominina som Australopithecina, och resulterar i släktet Homo (-2.8 Ma), med H. habilis (-2.1 Ma), H. erectus (-1.9 Ma) och H. heidelbergensis (-0.6 Ma) som några representanter. Kladogrammen är raka, men den egentliga utvecklingen är mer vävformad med artvisa återkopplingar.
Arten Homo sapiens uppstår emergent i Afrika vid -350 ka, vilket ska tolkas som utveckling under en tidsperiod och omfattande flera parallella linjer. Det är anatomiskt moderna människor, men de ser inte riktigt ut som oss, och de har inte heller samma beteende. Andra arter i samma släkte är H. neanderthalensis (-250 ka), H. floresiensis (-190 ka), H. luzonensis (-67 ka) samt H. denisova (-40 ka).
Arkaisk H. sapiens vidareutvecklas i och över hela Afrika under 280 ka. Senaste anfader till alla nu levande män representeras av Y-kromosoms-Adam från -275 ka, och motsvarande gemensamma urmoder av Mitokondriska Eva från -150 ka, med en obruten linje av döttrar in i vår tid.
Homo sapiens förgrenas vidare i underarten Homo sapiens sapiens, med syster i Homo sapiens idaltu (-160 ka), en nu utdöd människotyp. Klassificeringen är osäker, och en del menar att även H. neanderthalensis är en underart H. sapiens neanderthalensis.
Vid -70 ka vandrar arkaisk H. sapiens ut ur Afrika, likt tidigare H. erectus och H. heidelbergensis, där den senare småningom övergick till H. neanderthalensis i Europa. H. sapiens, som också stammar från H. heidelbergensis, stöter på sin kusin H. neanderthalensis i Levanten, förmodligen under fientliga former.
Men det sker även genetiskt utbyte mellan de två homininerna, frivilligt eller ej, vilket resulterar i en hybridform. I dag har ickeafrikanska människor alltjämt 2–7 % DNA från neandertal, omfattande runt en femtedel av neandertals fullständiga genom. Andelen var tidigare långt högre, men har rensats bort successivt.
Vidare migration från Levanten till Europa sker från -50 ka under senaste glaciala maximum, med ytterligare beblandning med neandertal. Motsvarande process sker även i Östasien, fast med H. denisova, som är en östlig utveckling av neandertal.
Den hybrid som blir resultatet av denna utveckling definierar den beteendemässigt moderna människan, benämnd tidig europisk modern människa (EEMH), och kännetecknas av en explosion i abstrakt tänkande, symboliskt beteende, teknisk miniatyrisering, kulturell utveckling med mera, representerat av istidskonsten i allt från aurignaciens venusstatyetter och musikinstrument till solutréens och magdaleniens grottmålningar i Altamira och Lascaux. En liknande process äger rum i Asien, och småningom diffunderar arvet även till Afrika i tillämpliga delar.
Man kan av utvecklingen sedan utvandringen ur Afrika dela in det moderna människosläktet i ett antal underarter, även om det av politiska skäl inte låter sig göras i praktiken. Till det inledande stamträdet kan man då foga Homo sapiens eurasica för västeuraser, och i mitt fall skulle man även kunna lägga till WHG/EEF/ANE I-M253 för att slå fast ett stridsyxearv av istidens västliga jägare–samlare (WHG), tidiga europeiska bönder (EEF) från Anatolien vid civilisationens gryning, samt äldre nordeuraser (ANE) i form av expanderande indoeuropéer vid -5 ka. I-M253 är en haplogrupp (Y-kromosom) som är ursprunglig för Europa i en mutation som ägde rum -5 ka och som är typisk för Sverige och Skandinavien.
Givet ett stridsyxearv kan man även (i princip) härleda en sedvanlig stamtavla från -2 900 och framåt, det vill säga 4 900 år eller 196 generationer av män och kvinnor som har fört sitt arv vidare. I genetisk mening finns ingen evolutionär utveckling att tala om under den tidsrymden, och praktiskt taget inget unikt för dessa individer finns kvar i den överförda arvsmassan – den späds ut med 50 % per generation under rekombination av DNA i könsceller. Det enda som sprids är i regel det gemensamma och det bestående för denna grupp av individer.
Evolutionen vilar dock aldrig, och småningom kommer en ny gren att krystalliseras ut ur Homo sapiens och färdas vidare mot ytterligare raffinering och anpassning, på samma sätt som har skett oräkneliga gånger under fyra miljarder år av oförtröttlig biologisk evolution. Om ytterligare 50 k år har vi möjligen en klart synlig förändring.
Vänsterns bildstormare är åter i full fart med att riva ned statyer och andra objekt som avbildar eller minner om för dem förhatliga företeelser, bland annat statyer av Cecil Rhodes och Winston Churchill (!). Orsaken härtill är att dessa personer i någon anakronistisk mening anses vara rasister, och därför inte ska få förekomma på allmänna ytor.
I Sverige vill denna ikonoklastiska vänster på samma sätt riva ned statyer av Karl XII och Esaias Tegnér, nationalromantiska figurer som anses vara förebilder för nynazistiska grupperingar, samt inte minst Carl Linnæus, upphovsman till den moderna systematiken i biologin.
von Linné, som han sedermera fick heta, är annars en av Sveriges mest kända och berömda figurer, en vetenskaplig storhet som saknar moderna motsvarigheter, en gigant som har satt ordentligt avtryck i den vetenskapliga historien, och vars taxonomiska system förebådade evolutionsteorin.
Kritiken mot Linné stammar från hans försök till klassificering av människan i fyra typer i portalverket Systema naturae, där Europæus albus utgör vita européer, Americanus rubescens röda amerindier, Asiaticus luridus gula asiater och Africanus niger svarta afrikaner.
Själva indelningen är mindre problematisk, eftersom den följer samma systematik som för andra arter i zoologin. I modern taxonomi skulle man, givet allt annat lika, enkelt kunna definiera åtminstone sju mänskliga underarter i form av västeuraser (Homo sapiens eurasica), östeuraser (H. s. asiatica), amerindier (H. s. amerindia), oceanier (H. s. oceania) samt tre afrikanska huvudgrupper i H. s. khoisanus, H. s. nilotis och H. s. yorubis.
En sådan indelning har en ytlig likhet med Linnés klassificering, men är bestämd på genetiska grunder. Klassiska «raser» följer ganska väl den genetiska indelningen, vilket naturligtvis inte är en tillfällighet.
Det «rasistiska» i Linnés klassificering består i att han till typerna kopplade vissa stereotypiska egenskaper, varvid vita européer kännetecknades av goda egenskaper som intelligens och styrka, medan övriga typer präglades av mindre smickrande karakteristika som girighet, snålhet och klenmodighet.
Att förknippa morfologiska attribut med inherenta egenskaper är i modern mening knappast vetenskapligt och samtidigt avgjort rasistiskt, men till Linnés försvar måste sägas att han enbart försökte placera människotyper, om vilka han saknade personliga erfarenheter, i en hierarki enligt hävdvunna fördomar. Han uppfann alltså inte sterotyperna, utan gav dem bara en systematisk form.
Vetenskapen är härvidlag självkorrigerande, och tokiga hypoteser förkastas eller raffineras i ljuset av bättre observationer. Samtidigt är fritt hypotetiserande en avgjord del i den vetenskapliga metoden, även om det i slutändan är viktigare att «tänka rätt» så som en viss devis förkunnar.
Den lilla parentesen i Linnés framställning väger helt enkelt inte upp till hans gärningar i övrigt, och vänstern gör nog klokt i att inte söka applicera moderna föreställningar på historiska personer, som agerade enligt sin samtids normer och värderingar.
Vetenskapligt konsensus förelåg i slutet av 1800-talet om att fysiken nära nog var fulländad, och att enbart ett par smärre problem återstod att lösa. Ett av dessa utgjordes av det så kallade svartkroppsproblemet, som bestod i paradoxen att en ideal svartkropp borde avge mer strålning än den tog emot.
Detaljerna är här inte så viktiga, men lösningen bestod i att anta, ad hoc, att elektromagnetisk strålning kan avges och absorberas enbart i diskreta paket, så kallade kvanta. Hypotesen kullkastade fysiken helt och hållet, och gav upphov till kvantmekanik, grunden för den moderna fysiken och det elektroniska informationssamhället.
Ett annat vetenskapligt konsensus för tiden gällde jordens geologiska utformning, som man liknade vid en uttorkad apelsin som blev skrovlig då vatten avdunstade. Jorden antogs ha befunnit sig i ett konstant avkylande förlopp sedan dess bildning som en smält kropp, och vid avkylningen expanderade jorden och bergskedjor formerades på kontinenter som antogs vara fixa.
Alfred Wegener föreslog istället att kontinenterna driver på en smält fond i jordens inre. Wegener var inte geolog, men såg det som minsta barn brukar se men som dåtidens vetenskapliga samfund inte tillmätte någon betydelse, nämligen att kontinenterna passar i varandra nära nog perfekt som pusselbitar. Till skillnad från kvantmekanikens pionjärer vann Wegener inte gehör för sina idéer, utan blev förlöjligad, för att han inte kunde presentera en mekanism, det vill säga att det var svårare att leda i bevis.
Ett tredje exempel på vetenskapligt konsensus gäller synen på kost och hälsa. Under 1960-talet växte ett sådant konsensus fram kring fett som orsak till hjärt- och kärlsjukdomar, vilket fick näringsinstitutioner världen över att efter amerikanskt mönster föreslå lågfettsdiet med större inslag av kolhydrater, inte minst socker.
Sedan dess har den flingkäkande världen successivt blivit allt fetare och sjukare, och trots att det finns uppdaterat konsensus kring lämplig diet kan trenden inte reverseras. Man tycks inte längre lita på de vetenskapliga råden och rönen, och i stället har otaliga extrema modedieter vuxit fram. Och trots konsensus är saken fortfarande svår att leda i starkare bevis, då ämnet är extremt komplext.
Vän av ordning förstår här att vi närmar oss ett nutida konsensus, nämligen det kring global uppvärmning och klimatförändringar. Det är riktigt, men inte i det syfte som kanske anas. Det vore nämligen dumt att ifrågasätta detta konsensus, eftersom det vilar på tämligen starka bevis.
Vad dessa paradigmskiften visar är att vetenskapen ständigt utvecklas och raffineras i ljuset av uppdaterade data, och att vi ingalunda befinner oss i något vetenskapligt slutstadium. Även klimatvetenskapen har förfinat sina metoder och vidgat sina data under årens lopp, och kan numera med bättre precision modellera förloppen.
Klimatvetenskap är dock en ung disciplin, och den lider av samma komplexitetsbarriär som medicinen. Den kan aldrig bli lika exakt som dess underliggande fysik och kemi, utan är beräkningsmässigt instabil och föremål för kraftig förenkling. Modellerna ger ganska grova fel när de tillämpas framåt och bakåt i tiden, till exempel på historiska och geologiska förlopp, och de kan därför inte ge annat än grova sannolikhetsintervall för effekter och konsekvenser.
Men att de vanligen har kvantitativt fel är inte samma sak som att de är kvalitativt odugliga. De pekar på en bestämd riktning och ger en suddig men i huvudsak korrekt konsekvensbeskrivning. Konsensus gäller just den kvalitativa delen, att det sker en uppvärmning, att denna klimatförändring i huvudsak är antropogen, och att denna förändring kommer att ha konsekvenser.
Däremot finns inget som helst konsensus i den kvantitativa delen, det vill säga hur stora effekterna och konsekvenserna blir, eller hur snabbt de kommer att ske (exempelvis issmältning). Än mindre finns något konsensus i vad man bör göra åt saken, om något alls – detta är nämligen inte en vetenskaplig fråga. Vetenskapen mäter, modellerar och förutsäger i sannolikhet, men ägnar sig inte åt politik.
Det är denna skärningspunkt mellan vetenskap och politik som är av intresse här, till exempel att vetenskapligt konsensus missbrukas av politiska krafter i syfte att vinna gehör för kraftfulla åtgärder. Kvalitativt konsensus kring uppvärmningen omtolkas som att det råder konsensus kring att det föreligger en «klimatkris» och att vi har «tio år» på oss att lösa problemet för att undvika en «katastrof». Det finns inget sådant konsensus, och det är inte heller vetenskapliga utsagor, utan politiska.
Politikens intresse för kosthållning är ungefär ett sekel gammalt, och hade en nationalekonomisk grund i att fostra starka arbetare som äter ordentligt. Senare tillkom mer detaljerade råd från särskilda myndigheter, eftersom god folkhälsa är av vikt för en välfärdsstat, särskilt en skattefinansierad sådan. Senare tiders råd gäller således inte att äta ordentligt, utan att äta mindre av vissa ämnen, som fett. Och i nutiden bestämmer politiker att barn ska äta vegetariskt i skolan för «klimatets» skull, som om denna mikroplanering skulle ha någon som helst inverkan på saken.
Givet hur misslyckat resultatet blev när politiken lade sig i kosten, med en fullkomlig explosion i fetma och diabetes, kan man inte frigöra sig från tanken att det kommer att bli samma eländiga utfall när politiker ska experimentera med klimatsatsningar. Kombinationen vetenskap och politik är nämligen sällan fruktbar, vilket historien har otaliga exempel på i allt från Lysenko till Rasbiologiska institutet.
Det är tämligen självklart att politiken måste förlita sig på vetenskapliga resultat och inte kan utmana verklighetens begränsningar, men det är inte samma sak som att politiken och vetenskapen ska gå i armkrok, vilket man gör i klimatfrågan (likväl som genusforskning och sociologi). Det är en politisk kropp i form av FN/IPCC som orkestrerar nationell politik världen över, men det finns ingenting som säger att detta är en politisk fråga överhuvudtaget. Ämnet är kidnappat av politiker som vill kombinera ämnet med andra syften.
Till en stats grundläggande uppgifter hör att upprätthålla försvaret av gränser, vidmakthålla våldsmonopol, skydda befolkningen från brottslighet och ge förutsättningar för att det finns bostäder, arbete, utbildning och vård. Med tanke på att inte någon regim som regerat på senare tid har kunnat lösa ens en sådan enkel sak som adekvat tillgång på bostäder (exempelvis genom marknadens försorg) eller att kontrollera skenande gängbrottslighet, har jag svårt föreställa mig att samma inkompetenta och handlingsförlamade kretiner ens skulle kunna börja att ta sig an ett så komplext problem som klimatet – i regering och riksdag sitter knappt en enda civilingenjör eller naturvetare.
Denna samling jurister, ekonomer och journalister är ändå i färd med att i allra minsta detalj utforma de existentiella villkoren för medborgarna, exempelvis vad man äter och hur man färdas, som om en sådan planekonomi någonsin har fungerat i verkligheten, och som om tekniska paradigmskiften inte har kullkastat verkligheten vid ett otal tidigare tillfällen.
Det är när sådana imbecilla idioter slår sina aphjärnor ihop som resultatet blir att å ena sidan lägga ned kärnkraft och å den andra att kompensera med polsk kolkraft, och att å ena sidan svälta dagisgenerationen med morötter och å den andra att subventionera diesel till jordbruket. Den ena handen vet inte vad den andra gör, för att det är omöjligt att överskåda komplexa makrosystem.
Den osynliga AI som bäst optimerar sådana problem benämner vi marknadsekonomi, och det är den mekanismen som är bäst skickad att inte bara optimera tillgång och efterfrågan på bostäder och bananer, utan som även är mest lämpad att styra teknik och investeringar i klimatoptimal riktning. Politikerna bör återgå till sina enklare kärnuppgifter istället för att försöka implementera en ny sovjetunion på den politiserade klimatdystopins grund.